Showing posts with label Fordítva könyebb. Show all posts

Saturday, March 26, 2011

StereocentrOpus

Photobucket

Ezt is megértem…Tegnap megérkezett a Monocentropus balfourim vagy egyszerű hobbiszlenggel élve: a „balfim”. Ennek a póknak van némi előtörténete nálam. Sok-sok hivatalosan el nem ismert hobbigenerációváltással ezelőtt, még a netmadárpókozás hajnalán, néhány white fülű hobbistával egyetemben, gyakorta megcsodáltam azt az 1 azaz 1 db képet, amely erről a fajról volt megtalálható az interneten. Persze volt még egy kép, de azt nagyon fondorlatos kereséssel lehetett csak előtalálni a Socotra kulcsszó bevetésével. Lényeg a lényeg, nálam ez a faj ott volt a „mindenképpen” top 3-ban.

Aztán a hihetetlen gáz méreteket öltő hájpolás, ami a faj körül kezdődött, miután bekerült a hobbiba, már nem hozott lázba. Először még érdekes, de a sokadik ilyen preztizspók már nagyon unalmas. Ekkor döntöttem úgy, hogy önuralmat gyakorlok és megkímélem magam a borsos belépőtől, „lesz ez még így sem alapon”. Lett…Szerencsére viszonylag könnyen után tenyészthető a faj, így ma már mondhatni dömping van belőle. Aztán a napokban véletlenül úgy alakult, hogy „oda lehetett csapni” néhány másik pók mellé. Mivel ezt a pénzt már vastagon megéri számomra, oda is lett csapva by Gábor Koczka. Öröm a köbön & heppi end.

Tanulság (nincs, de kellene valami a végére)?…Túzokból veréb?

Friday, July 24, 2009

Te kis Buthus

A neten böngészvén akadtam rá egy új Wilson Lourenco cikkre, melyben a Szahara Buthidae családba tartozó skorpióiról ír egy egész kellemes, mintegy 15 oldalas kis szösszenet, lélegzetelállítóan jó rajzokkal. Két új génuszt írnak le a Saharobuthus nevűt, melynek etimológiáját (néveredetét nem kellene össze keverni a Saccaromycetes nevű mikrobákkal :P), illetve a Panthobuthus nemet. Hátpajzsrajzok 8 génuszra, összehasonlítás ezzel azzal. Igazság szerint ezeket a karaktereket akár már egy jobb lupéval vagy gyengébb mikroszkóppal is meg lehet vizsgálni, tehát mehet a sufnitaxonómia ezerrel. image

A cikk egyben megadta az apropót arra is, hogy a skoreszos képeiről lefújjam a pórt port. A képek egy Canon Digital Ixus 5 MP-s automata géppel készültek. Istenigazából azért mutatom be őket, hogy azért azzal is lehet.

Buthus occidentalisButhus occidentalisButhus occidentalis

Aki szívesen beleolvasna a cikkbe és az adott újsághoz nincs hozzáférése, annak a cikket szívesen elküldöm, miután nekifutna a az alant olvasható angol szövegnek (ami nem szak) és annak magyar megfelelőjét a DNFS fodítások topikjában elhelyezte (a szabályok egy éve nem változtak). Google “tranzlátorok”, fordítógépesek kíméljenek. As emphasised in recent publications (Qi and Lourenço 2007), scorpion diversity is particularly high in deserts and arid formations (Polis 1990). Th e scorpion fauna of North Africa, particularly the one specifically adapted to the Sahara desert has been the subject of intensive study, synthesised in the monographic work of Vachon (1952). Neverless, more detailed inventory work, and the revision of classical groups has revealed an increasing number of new species and even new genera. These have been the subject of several recent publications (e. g. Lourenço 1998a, 1999a,b, 2001a, 2002a, 2003, 2005a, 2006; Lourenço and Duhem 2007; Lourenço et al. 2003; Qi and Lourenço 2007). From these, it is apparent that knowledge of this fauna is still far from complete, and many other species, and probably genera too, await discovery. Moreover, the precise patterns of distribution of most taxa are yet only poorly understood. A similar assumption can be made about the fauna of the entire Palaearctic region since a great variety of scorpion genera inhabit the Middle East and Central Asia (Vachon 1958; Levy and Amitai 1980; Vachon and Kinzelbach 1987; Sissom 1990; Fet and Lowe 2000; Fet et al. 2003). The desert areas of the Palaearctic region have been a rich source of speciation for several animal taxa (Kryzhanovsky 1965). It is assumed that extensive aridity during the Tertiary period in the southern Palaearctic region facilitated radiation among scorpions (Nenilin and Fet 1992; Fet 1994; Fet et al. 1998, 2003) as well as in other groups of organisms. Fet et al. (2001) drew particular attention to the diversity of psammophilic scorpions from the Palaearctic deserts of central and southern Asia. Th ese authors described a new genus and species of buthid scorpion from the Baluchistan Province of Iran, and presented a very complete table of characters for six buthid psammophilic genera, Anomalobuthus Kraepelin, 1900, Liobuthus Birula, 1898, Plesiobuthus Pocock, 1900, Psammobuthus Birula, 1911, Pectinibuthus Fet, 1984 and Polisius Fet, Capes & Sissom, 2001. In parallel studies on scorpions from the Middle East, particularly those collected by the late Prof. Clas Naumann during his fi eld trips to Afghanistan in the early 1970s, have led to the description of several new taxa (e. g. Lourenço 1998b, 2001b, 2004a,b, 2005b; Lourenço and Huber 2000; Lourenço and Pézier 2002; Lourenço and Qi 2006a,b,c; Lourenço et al. 2002; Stathi and Lourenço 2003; Monod and Lourenço 2005). It appears obvious that most of the scorpion genera found in the Saharo-Sindian domain are exclusively elements of the Sahara and/or Palaearctic deserts. Only two genera, Hottentotta Birula, 1908 and Mesobuthus Vachon, 1950 contain species that are also found outside the arid zone of the Saharo-Sindian region. Moreover, diversity and species richness seem to reach a high degree at the extremities of the Saharo-Sindian region. Th is appears particularly true of the faunas of both Morocco-Occidental Sahara and Mauritania on the West and Afghanistan on the East. Here we describe two new remarkable additions to the family Buthidae C. L. Koch, 1837. Th e fi rst, a new genus and species was collected by the late Prof. Pierre Louis Dekeyser in the region of Adrar-Sotuf, Occidental Sahara. Th is new genus shows affinities with the genera Compsobuthus Vachon, 1949, Mesobuthus and Sassanidotus Farzanpay, 1987. Th e last two genera, however, are absent from the fauna of North Africa. Th e second discovery is also of a new genus and species collected by the late Prof. Clas Naumann during fi eld trips to the North of Afghanistan. Th is new genus appears more of a ‘puzzle’ since it possesses characters seen in several buthid genera, especially, Odontobuthus Vachon, 1950, Mesobuthus, Hottentotta, Vachoniolus Levy, Amitai & Shulov, 1973 and Buthus Leach, 1815. It is, perhaps, signifi cant that this last genus appears to be absent from Afghanistan.

***************************************************************************************

A végére Yareus szép képei mutatják, hogy mily szép állatok a skorpiók.

y3 y y2

Tuesday, June 09, 2009

pi. pi. piiiiiii reggel nyolc óra van

Üdvözli önöket az Apropók blog. Híreinket hallják.

Új kiegészítővel, adatbázissal bővült a Norman Platnick által, WSCként is ismert pókkatalógus. Az adatbázis, a talán itt sem ismeretlen Robert Raven keze munkája. Kattints IDE a kipróbáláshoz.Az adatbázisban egyszerűen és gyorsan tudunk keresni. A legnagyobb előnye, hogy egy adott szerző ÖSSZES művéről tudomást szerzünk alig néhány kattintás után (ez nekem nagyon hiányzott a sima WSCből). Mivel egy adatbázis felépítés jóval több időbe telik, mint a sime html-s formátum frissitése, ezért az még a 2007 előtti, 8.5ös adatokat tartalmazza. Bízom benne, hogy hamarosan feltöltik a hiányzó adatokat is.

A WSC kiegészítésének hatására új kiegészítővel bővült a honlapom. A cikkek-re kattintva a taxonómiai cikkek alatt a pdf linkek után egy “taxa” linket is beszúrtam, melyre kattintva az adott cikk taxonómiai változtatásai, eredményei szerepelnek. Íme egy példa.

Új mygalomorphos cikk a Zootaxán. Peter Schwendinger Dipluridae-s előadását a “Phyxioschema” (fixioszkéma) génuszról volt szerencsém élőben (mellesleg Platnick mögött) végighallgatni. Peter persze – nyilván Platnick kedvéért mert mindenki őt viccelgette ott – megjegyezte, hogy talán nem kéne eröltetni az amerikai kiejtését a latin neveknek (pl: Argiope – Árdzsájopi, E. coli – Ikoláj, emboli – emboláj), hiszen akkor pl. Thailand-ot is Szftailandnek kéne mondani az meg már hogyan nézne ki… Az előadásban kitért arra, hogy ebben a speciális (egyébként általánosságban szerintem a mygalokra lehetne ezt alkalmazni) esetben nem a másodlagos párzószervet (pedipalpus, tapogatóláb), hanem a második láb combján található a párzás során használt képlet alapján allította fel az új fajokat. Peter Schwendingerről azt kell tudni, hogy Dipluridae-kal illetve félpókokkal elég régóta foglalkozik, gyönyörű rajzai vannak.


image

image

image

A bevezetést lefordító természetesen  megkapja az amugy zárolt cikket. (The Dipluridae are small to medium-sized mygalomorph spiders, which usually possess elongated posterior lateral spinnerets used for building irregular three-dimensional webs that lead into retreats. They occur in warm areas of all continents except Europe and Antarctica. Most inhabit forests or savannas; none are known from intertidal habitats, and very few from arid areas with little or no vegetation. Phyxioschema is a diplurid genus with arid-adapted species; its type species, P. raddei Simon, 1889, was described from a desert in Turkmenistan. Only two valid Phyxioschema species, both with a fairly wide geographical distribution, were previously recognized: P. raddei (from central Asia) and P. suthepium Raven & Schwendinger, 1989 (from northern and central Thailand), one described exactly 100 years after the other. A second form in Thailand (Group B, see Raven & Schwendinger 1989: 59) was then not recognized as a distinct species, but it is here described as Phyxioschema erawan sp. n. No other Phyxioschema are known from the regions between these two areas, but surprisingly more congeneric species have recently been discovered in Thailand. Most spiders were found living in fairly large webs (occupying ca 0.3 x 0.2 m) on limestone. An apparently widespread hexathelid, viz. Macrothele sp. [similar or identical to M. maculata (Thorell, 1890); see Schwendinger 1996: 578], lives in the same habitat and constructs the same kind of webs in northern Thailand. Hence, I initially did not pay much attention to such webs in other parts of the country. Near Phang Nga in southern Thailand, I first recognized that spiders living in these webs are actually diplurids, and this encouraged me to look more carefully, collect juvenile males and raise them to maturity. Siegfried Huber later also informed me about diplurids at two other localities in Thailand. Five new Phyxioschema species have thus become available and are described here. Furthermore, at least one undescribed Phyxioschema species from Central Asia was sent to me by Sergei Zonstein. This (or these) shall be treated together with P. raddei separately.)

Ugyanez érvényes a Brachypelma kahlenbergi leírását közlő cikkre, melyet Raptor ajánlott fel (majd megjegyzésbe légyszi szúrd be a lefordítandó részt)

Megacikk a Zookeys-en. Jeremy Miller frissen európai pókguru (valóban az), nem hagyta cserben a friss alkalmazóit. Alig egy évvel a alkalmazása után megacikkel lepte meg a nagyérdeműt. A cikket ingyenesen le lehet szedni. A 195 oldalból 86 a szöveg a többi kép/szkenning és rajz. Jeremynek ez a második gigacikke az első Észak-Amerika furcsafejű póknemeinek (Erigoninae)) átfogó ismertetője. A képen 3 háló látható: egy Symphytognathidae egy Mysmenidae és egy Linyphiidae háló látható (balról jobbra).

image

A zookeysről pusztán annyit kell megjegyezni, hogy a Zootaxa riválisa szeretne lenni, s bár 1 lépéssel még le van maradva, egy dologban bizonyosan első lesz. Nemsokára ott fog megjelenni egy cikk, melynek én is társszerzője vagyok ;).

Végül, de nem utolsósorban megalkottam a google segítségével egy speciális e-könyvkeresőt, melyet a +google gomb lenyomásával a saját gépeden a google.comhoz társíthatsz. Kifejezetten pókos könyvet nem fogtok rajta találni, főleg anatómiai és egyéb tudományos és tankönyvek lelhetők fel rajta angolul. Ökológia/etológia/evolúció/molekuláris dolgok, az alapokat sohasem késő elkezdeni…

Köszönöm a figyelmet, a modorosblognak a sztilisztikai (mwuhahahaha) elemek összegyűjtését. Nélkülük tuti nem tudtam volna ilyen békebeli kádárkorszakízűre megírni ezt a posztot (már amennyire az, nem akartam mégjobban elriasztani a jónépet).

Wednesday, April 22, 2009

Nem lehet Bertaninak betartani...

Ebbe ne is menjünk bele miért is ez a cím, inkább arról essék szó hogy még meg sem száradt a hibajavító a 9es alatt amivel a titkárnős az első két hétben a 2008, nyolcasát festették mialatt Bertanidoktornak kijött egy új cikke.

Sokszor és sokat kritizáltam összefoglaló fordításokat. Akik akkor szomorúan vették tudomásul most megnézhetik, hogy szerintem hogyan kell csinálni. Lehet kritizálni (lehetőleg olyan aki már fordított is ilyet), és ha olyan akkor még ki is javítom.

z

Egy új brazíliai Oligoxystre Vellard 1924 (Araneae, Theraphosidae) faj leírása.

Hím holotípus
Összefoglaló: Egy brazíliai, tudományra új Oligoxystre faj, az Oligoxystre diamantinensis n. sp., leírását (mert EZ az) közöljük. A hímet minden más Oligoxystre faj hímjétől meg lehet különböztetni az ivarhólyag alapján, ahol a hímtagról hiányzik a csúcsalatti apró perem, a hímtag rövidebb mint a pikkely hosszának 2,5szerese, illetve a párzósarkantyú merőleges az első lábszár tengelyére. A nőstényt a jóval hosszabb, mint széles spermatartók alapján különíthetjük el, melyeken nincsennek oldallebenyek, és egy nagy véglebeny mellett öt apróbbat találunk körülötte. Továbbá mind a hím mind a nőstény megkülönböztethető [a génusz más fajaitól] az egész testre jellemző fémes kék szín alapján, mely az utótest vöröses szőreivel kontrasztot képez. Az összes, eddig leírt Oligoxystre fajra érvényes határozókulcsot is publikálunk.

Eredeti: new species of Oligoxystre, Oligoxystre diamantinensis n. sp., is described from Brazil. Male can be distinguished from all other Oligoxystre species by the male palpal bulb lacking a small subapical keel on the embolus in conjunction with the embolus length (less than 2.5 times the tegulum length) and by the tibial spur being inserted in a perpendicular angle in relation to the tibia axis. Female can be distinguished by the spermathecae being much more longer than wide, lacking lateral lobes and having a large terminal lobe with five smaller lobes around it. Additionally, males and females can be distinguished by the general blue metallic color pattern contrasting with the reddish setae on the abdomen. A key for all described Oligoxystre species is presented.

Nőstény paratípus
Durván szépecske a cikk, a hím holotípusról ábricsek, fotó, nemsemmi…
Élőhelyfotó
Élőhely: Campo Rupestre area in Diamantina, Minas Gerais, Brazil
Gyakorlásnak a bevezető…
The genus Oligoxystre Vellard, 1924 comprises six species of small theraphosids recorded in Brazil and Bolivia. The type species, Olygoxystre auratum Vellard, 1924, was described from Catalão, State of Goiás, Brazil based on a single male and several juveniles (Vellard 1924). Raven (1985) synonymized the genus Cenobiopelma Mello-Letão & Arlé, 1934 with Oligoxystre thus adding two species to the genus, Olygoxystre mimeticum (Mello-Leitão & Arlé, 1934) and Olygoxystre argentinense (Mello-Leitão & Arle 1934). Guadanucci (2004) transferred O. argentinense to his new genus Catumiri Guadanucci, 2004. Later, the same author revised the genus Oligoxystre, described four new species, synonymized Pseudoligoxystre Vol, 2001 with Oligoxystre and considered Cenobiopelma mimeticum a nomem nudum (Guadanucci 2007). In his Catalog, Platnick (2008) disagreed with this interpretation and considered C. mimeticum a nomem dubium. In a recent herpetological survey carried out in the city of Diamantina, State of Minas Gerais, Brazil, a new species of Oligoxystre was discovered and is herein described
A kulcsot is idemásolom, mert látni kell hogy ez számít nem pedig a sündesznyósabb segg…
Identification key for Oligoxystre. Modified from Guadanucci (2007). Female of Oligoxystre auratum is undescribed.
Males
1 Male palpal bulb embolus with small subapical keel (Guadanucci 2007: Figs 2-5, 26-28) .................................................................................................2
– Embolus without keel (Figs 1-3; Guadanucci 2007: Figs 22-23, 31-32, 35-
36) ..............................................................................................................3
2 Embolus long and thin, slightly bent distally (Guadanucci 2007: Figs 26-
28) ......................................................................................O. dominguense
– Embolus short, strongly bent medially (Guadanucci 2007: Figs 2-5) ........O.
bolivianum
3 Bulb twisted on itself, prolonged by long collar, depressed at base and thin
apical end, curved (Vellard 1924: 152, pl. 10 Fig. 38) ................O. auratum
– Bulb not as above ........................................................................................4
4 Embolus more than 3 times longer than tegulum (Guadanucci 2007: Figs
22-23); spiders with cephalothorax and abdomen dark ventrally; white setae
over dorsal region of cephalothorax (Guadanucci 2007: Fig. 38) O. caatinga
– Embolus less than 2.5 times tegulum length (Figs 1-3, Guadannuci 2007:
Figs 31-23, 35-36); spiders with coloration on ventral portion browish or
yellowish; without white setae on body .......................................................5
5 Leg I tibial spur positioned in a perpendicular angle in relation to the tibia
axis (Figs 4-5); spiders with carapace, chelicerae, abdomen and legs covered
dorsally and ventrally with metallic blue setae (Fig. 7)...................................
............................................................................. O. diamantinensis sp. n.
– Leg I tibial spur with branches positioned in an inclined angle in relation to
the tibia axis (Guadanucci 2007: Figs 30, 34); spiders with carapace and legs
browish or reddish ......................................................................................6
6 Embolus slightly bent distally (Guadanucci 2007: Figs 31 32); carapace and
legs brown ............................................................................ O. tucuruiense
– Embolus slightly curved distally (Guadanucci 2007: Figs 35-36); carapace
and basal portion of legs reddish and distal portions of legs dark (Guadanucci
2007: Fig. 39) ...........................................................................O. rufoniger

A fordítók megkapják.

Wednesday, January 28, 2009

A ZETETOSZKÓP

Most jött nemrégiben a TAXACOM levlistán Richard Zander észvesztően egyszerű megfogalmazása a zetetoszkópra. Aki nem tudná mi a zetetoszkóp az keressen a zetetoscope kifejezésre. Így is NULLA találata lesz a googleban (zeteto = vizsgál, görögül). Nos a zetetoszkóp téma a MI a faj (örökkön örökké felbukkanó, kicsit a "vedlés után 2 napja még nem eszik a pókom" kérdésre hajazó) téma kapcsán cuppant fel. Így Richard segítségével most el tudom magyarázni, mit csinál egy taxonómus. És hogy csinálja.


Nyomd meg a PIROS gombot. Gyűjts/szerezz be egy rakat példányt, legyen köztük névhordozó Nyomd meg a NARANCSSÁRGA gombot. Válogasd szét a példányaidat csoportokba, bármilyen erre alkalmasnak ítélt módszert/technikát alkalmazva.
Nyomd meg a SÁRGA gombot. Állapítsd meg az evolúciós rokonsági kapcsolatokat, bármilyen erre alkalmasnak ítélt módszert/technikát alkalmazva.
Nyomd meg a ZÖLD gombot. Nevezd el a kisebb csoportokat, amik evolúciósan összetartozónak tűnnek, a legelső elérhető érvényes névvel, a többit meg tedd a szinoním listába. Ezután valamilyen hasonlóságot alkalmazva rendezd a csoportokat egy hierarchikus rendszerbe, úgy hogy elkerüld a konvergenciát, bármilyen erre alkalmasnak ítélt módszert/technikát alkalmazva.
Nyomd meg a KÉK gombot. Írd le mit csináltál.
Nyomd meg a LILA gombot. Küld el egy tudományos újságba.
Ha elfogadták a cikked nyomd meg az IBOLYASZÍNŰ gombot. Egy csengő fog megszólalni.

Ha nem fogadták el nyomd meg a PIROS gombot...

Az eredeti:
Press the Red button. Order specimens including types.
Press the Orange button. Sort specimens and types into groups using
whatever techniques seem appropriate.
Press the Yellow button. Decide evolutionary relationships using
whatever techniques seem appropriate.
Press the Green button. Name smallest distinctive groups that seem
evolutionarily coherent with the earliest name of an included type, then
put other type names into synonymy, and arrange a hierarchy of groups
using similarity and avoiding convergence with whatever techniques seem
appropriate.
Press the Blue button. Write this up.
Press the Indigo Button. Send to a publisher.

If accepted for publication, press the Violet button. A bell will ring.
If rejected, press the Red button.


Figyelem, bár a HUMOR a cimkék között szerepel, ez kicsit geeky vagyis szakmai humor...
mint akár ez is:


Forrás: SCIENCE made stupid
Fordítás: induktív tudományos módszer:
Készíts el egy hipotézist
Pályázz támogatásért
Végezz kísérleteket, a hipotézised alátámasztására
Alakítsd az adataidat a hipotézisedhez
Publikáld

Deduktív tudományos módszer:
Készíts el egy hipotézist
Pályázz támogatásért
Végezz kísérleteket, a hipotézised alátámasztására
Alakítsd hipotézisedet az adataidhoz
Dátumozd vissza a javított hipotézidet
Publikáld.

Wednesday, November 26, 2008

Apró apropó

A Zoological Journal of the Linnean Society, egy nagyon jó nemzetközi újság. Fel vagyok íratkozva a hírlevelükre, ahol rendszeresen tájékoztatnak a friss szám tartalmáról.
A mostaniban van egy ami kicsit marginálisan de érinti a blogot.

A cikkekre az eddig érvényes szabályok vonatkoznak: leendő fordíto jelentkezik, kap egy részletet, fordít, itt közzétesz majdan cikket megkap.

Pages: 651-675
Comparative anatomy of the mesosomal organs of scorpions (Chelicerata, Scorpiones), with implications for the phylogeny of the order
ERICH S. VOLSCHENK, CAMILO I. MATTONI, LORENZO PRENDINI
ABSTRACT

Published Online: 25 Nov 2008
DOI: 10.1111/j.1096-3642.2008.00426.x

Pages: 848-855
Proposed amendment of Articles 8, 9, 10, 21 and 78 of the International Code of Zoological Nomenclature to expand and refine methods of publication

ABSTRACT

Published Online: 25 Nov 2008
DOI: 10.1111/j.1096-3642.2008.00518.x

Thursday, November 20, 2008

Fő a tudomány. Etwas Kochen? Jájá... madárpóktejet

A múltkor linkeltem be az Americanarachnology.orgon található konferenciakötetet. Most kaptam meg az előadások kivonatát, így a reggeli KV mellé toltam egy kis olvasgatást. Negyedegyre lett kész a poszt.
Egy laza kis cikkel gondoltam indítani, ami legnagyobb meglepetésemre, a hobbihoz több szálon kapcsolódik.
Gen. brunnipes-nek írhatnám ha viccesen, a Pamphobeteus sp.-s elnevezés típust megfordítom, vagyis hogy a faj nem tudjuk melyik génuszbe tartozik. Bár ilyenkor az incertea sedis (bizonytalan helyzetű) latin kifejezést használják. Ráadásul a Mygale brunnipes nomen dubium azaz "nem tudom mi lehet az" is volt. Nézzük meg hát a sztoriját, eredetiben itt olvasható.


Merni sem reméltem, de a hobbiban nem ritka a faj, amit a TTSen brózolva hamar észrevehetünk.
Tarantula store
Sőt, vájszeműek és gúglibűvészek megtalálhatták a cikk előzményeit is a jól ismert orosz madárpókász, Bagaturov oldalán:

Méghozzá a 2007 es hírek között
Következzen tehát a szöveg szó szerinti fordítása...ezt az eltérő szín és betűtípus jelöli. Néhol pakolok hozzá egy kis kiegészítést...
4. Alant néhány madárpókos hír, melyeket a szerzők maguk hoztak nyilvánosságra a 17th International Conference of Arachnology Brazíliában (az eredmények nyomtatása alatt van - in press., ha másképp nincs jelölve).
4.1.Az össze madárpókcsoport közül valószínűleg az avik (Aviculariinae) a legzűrösebbek, különösen a névadó génusz az Avicularia zűrös és felismerni is nehéz ha egyáltalán lehetséges, aminek az az oka, hogy bár a a XIX században felfedezték és leírták őket (sőt a Brazíliai Atlanti Esőerdő fajcsoport revideálás alatt van) mégis a vizsgálható példányok (a típuspéldányok hiánya) nem elérhetőek és friss gyűjtés sincs.
A revízió előzetes eredményei alapján, mintegy 29 fajról nem sikerült kideríteni, hogy hogyan nézhet ki [nincs meg a típuspéldány, és az eredeti leírás alapján nem dönthető el pontosan a faj kiléte], ezeket “nomen dubium” ként listázza a katalógus [nomina dubia - többesszám] (ezek 1805-1889 között írták le). Hosszú ideje nem készült a génuszról átfogó revízió, néhány fajleírástól eltekintve, melyek érvényessége általában kérdéses, és inkább több kárt okoztak mint hasznot
Ezért, a mostanság, a 17th International Congress of Arachnology-n, a nagy brazíl madárpókprofesszor, Rogerio Bertani (Instituto Butantan, São Paulo, Brazil) által nyilvánosságra hozott kutatási eredmények valóban jó kezdés mindazok számára, akik érdeklődnek a csoport felé, hiszen a legtöbb Aviculariinae alcsaládba tartozó faj keresett fajnak számít a falakó madárpókok között. Bertani jelentése szerint, a következő vizsgálatokat végezték el, melyek a következő eredményeket szolgáltatták. Négy [az Ephebopus revízió előtt 5 génuszt vettek ide, azóta már többet], Brazília különböző régióiban elterjedt génuszt találtak: a földrajzi elterjedést feltérképezték, biológiai és ökológiai adatokat is gyűjtöttek.
1) Typhochlaena C. L. Koch (még újra kell érvényesíttetni a nevet, [jelenleg az Iridopelma szinonímja]) típusfaj: T. seladonia C. L. Koch (amiről már itt egyszer szóltunk), de íme a neten fellelelhető néhány kép egyike, illetve 2 fajt fog még leírni, Brazíliából.

A génuszra jellemző, hogy a többi Aviculariinae nemtől eltérően (kivéve az Ephebopus génuszt) fák meglazult kérge alatt készíti el a lakócsövét.
2) Pachistopelma Pocock, melybe csak egy faj tartozik [vagyis a génusz monotipikus]: P. rufonigrum Pocock mely kizárólagosan a broméliák belsejében él. Előfordul a hobbiban. A kép innen van tükrözve)

A Pachistopelmáról több cikk is elérhető ingyen a neten: cikk1, cikk2.

3) Iridopelma Pocock, melybe 3 faj tartozik, az I. hirsutum Pocock, és I. zorodes Mello-Leitão illetve egy új Brazíliai faj;

A kép az arachnoboardsról van tükrözve, klikk a képre thread olvasásáért.
4) És végül az Avicularia Lamarck, az A. diversipes C. L. Koch fajjal és egy újjal melyet Brazíliából írtak le. Az utóbbi két génusz tagjai a (3, 4) növényeken élnek, ahol a lakócshelyüket levélből és pókselyemből készítik.
A négy génuszon belül a következő nevezéktani változásokat fogják javasolni: Avicularia palmicola Mello-Leitão az Iridopelma hirsutum szinonímja. Avicularia pulchra Mello-Leitão és a A. recifiensis Struchen & Brändle, a P. rufonigrum szinonímja. Az Avicularia gracilis (Keyserling) és A. leporina (C. L. Koch) fajok kiléte nem állapítható meg pontosan így ők ”nomina dubia”-vá válnak.
Felmerülhet logikusan a kérdés, hogy oké de ez a brunnipes hogyan kerül a levesbe (azontúl, hogy ő is megjárta már az Avicularia-t? Nos nézzük hogy a konferenciajelentés következő pontja mit is ír róla?
4.2. A következő apró, de fontos pont az Avicularia nemmel kapcsolatban, szintén Rogerio Bertani és ezzel együtt 2 másik Brazíliai kutató, a híres Fukushima, C.S. [A Cyriocosmus revízió kapcsán lehetne ismerős ha valaki a halántékát vakarja] és a közönség által kevéssé ismert Nagahama R.H. nevéhez fűzödik. A következő felfedezést tették egy apró madárpókkal kapcsolatban mely nagyon hasonlít egy régen felfedezett melyet eredetileg Mygale brunnipes C. L. Koch néven írtak le (most az Avicularia nem tagja, mint “nomem dubium”). A madárpókot a brazíliai híres/hírhedt atlanti erdőkben gyűjtötték.
C. L. Koch eredeti leírásában van egy olyan ábra, mely a faj rendkívül jellegzetes színezetét ábrázolja, melyek pontosan egyeztek azon egyedek színezetével melyeket Paraíba, Alagoas és Pernambuco, államokban gyűjtöttek Brazíliában.

A faj hasonlít a Plesiopelma és a Homoeomma nemekre az ivarszerv alakjában, de különbözik abban, hogy hiányzik a Plesiopelma nem hímeinél megfigyelhető első másodvégízen található dudor, illetve különbözik a Homoeomma nemtől abban, hogy hiányzik az hímek ivarhólyagján található ujjszerű nyúlvány. Továbbá, ellentétben ezekkel a nemekkel, melyek első másodvégíze a párzósarkantyú ágai közé hajlik be, ennél a fajnál a másodvégíz a külső ágának végéhez illeszkedik.
A szerzők egy előzetes filogenetikai vizsgálatot is elvégeztek a Avicularia brunnipes, Plesiopelma spp., Homoeomma spp., Cyriocosmus spp., Hapalopus spp., Euathlus sp. és külcsoportként Grammostola sp. faokon, ami megmutatta, hogy a fajt ujra le kell írni, és az Aviculariinae alcsaládból ki kell zárni, át kell tenni, mint új génuszt (Kochia) a Theraphosidae alcsaládba.
———————————————
Eddig Bagaturov. Vagyis az Aviculariinae-s istálló ganajozás alatt van, ami remek, minimum 2 posztdok dolgozik rajta ami még remekebb, és mindezt Bertani keze alatt, azt hiszem ez a legcsodálatosabb hír amit a hobbisták hallhattak. Az sp. “Ekuádorba fogtam-e” és egyéb borzadvány PTN-eknek remélem legalább itt nemsokáig lesz maradásuk…
A képek Rick West oldalán vannak, ide csak tükröztem őket, ezek találhatók amúgy feke-fehébe a cikkben is. Így néz ki a Kochia:


Tuesday, September 16, 2008

A brazil szappanopera alapeleme a gonosz testvér

A hatalmas lendületű (tudom elkezdősött a szorgalmi időszak) Kapor féle Phoneutria után kicsit elcsendesültünk fésűspókilag. Hátha az adott képek meghozzák a fordítani/írnivágyást némelyekben.


A Cupiennius génusz

C. salei

C. getazi

C. coccineus

C. cubae

C. remedius

Fordítani ezt kéne, a zárt osztályra. A jutalom a könyv hobbisták részére is fontos infót tartalmazó részének szines 600 dpi-s szkennelt pdf-je, ami 59 dupla oldalt tartalma (gyk 118), ami a névmutatót, és a hosszas irodalomlistát is tartalmazza.


A képhivatkozások szándékosan nincsennek bennt.

Monday, September 08, 2008

bbeynök. Mi ez?

Mi lenne, az új kulcsszó, azaz: fordítva könyebb. HAHAHAHA
Nah felraktam az első oldalt aki érdeklődik eshet neki. Külön nekem ne szóljon senki hogy "én már fordítom" csak a készet küldje el... Előre is köszi.

Monday, August 11, 2008

Coddington mount modified


The original Coddington (1983) mount is to be found here. I have learned about the modified mount from Fernando Alvarez-Padilla, and wishes take no credit for it. I simply try to summarize the whole procedure in a way it is accessible for more people.

I have used the modified Coddington mount (henceforth MCM) to make the two images, where the sperm ducts are also visible.

Practical information about the required elements (all of these are easily accessible in many shops; however I’ll provide “a source” as well, which comes from a quick google search on the item, unless stated otherwise):

clip_image003

#1 Microscope slide (a source)

clip_image005

#2 Cover slips (a source)

clip_image007

#3 Vaseline (a source)

clip_image009

#4 Glass scribe (I bought one in a hardver store, which was cheap, and hard to use. I finally ended up in using a Bel-art glass scibe, which turned to be excellent)

clip_image011

#5 Scale cover glass 22mm x 60 mm (a source). Slide covers are cheap, and at the same time very hard (if not impossible) to clean. It is possible to clean the area above the specimen with a dry paintbrush, but after a while and if any liquid has been on the other surface of the cover, it is much better to trash the cover glass, then try to clean it.

clip_image012

#6 Methyl Salicylate also known as methyl-benzoate (see details on the label above). You can alternatively use lactic acid, Hoyer solution, clove oil, etc. for the same effect. I have experience mainly with methyl salicylate)

Note: methyl salicylate is an apolar aromatic liquid. This means with water it creates a milky liquid, with some gas generated aside. This might be sometimes useful (tracing ducts in a vulva), but since it is gas, it will show as black spot on an image. You can leave the specimens in methyl salicylate, but be aware it sometimes weaken the joints. To avoid this, use 96% alcohol bath to rinse the specimen before applying methyl salicylate (same apply after photographing the specimen). To wash down methyl salicylate use common household detergent, and only after that apply water. Rinsing the microscope slide with alcohol after this, will give you spotless drying. It is important to avoid dusting the cover glass and microscope slide. Methyl salicylate melts plastic, so use glass equipment only. Exceptions are the plastic micropipettes which could be used, but then needed to washed by either cc alcohol or a detergent.

#7 96% Alcohol

#8 Detergent

#9 Tooth pickers

#10 Glass dishes

#11 Ruler

#12 Compressed air duster (a source)

#13 Micropipettes

-------------------------------------------------------------------------------

Make a Coddington mount step by step

Step1: Glue few (depend on the size of the palp, or other structure you want to examine, the smaller it is the fewer slips you need) cover slips on a microscope slide. I normally use nail polish.

Step2: Use your glass scribe to cut the scale cover glasses into narrow and long pieces. Use a ruler to aid your cut! Dust off the glass pieces, and store these glasses in a box where they cannot dust.

Note: you could skip this step. A full cover glass is also good, but a bit harder to manipulate afterwards. See an example below.

clip_image016

Step3: Apply Vaseline on the top coverslips and gently put the cover glass on top.

Step4: put methyl salicylate on the microscope slide, within the reach of the cover glass. Use enough, but not too much. Quantity depends on the height of the cover glasses.
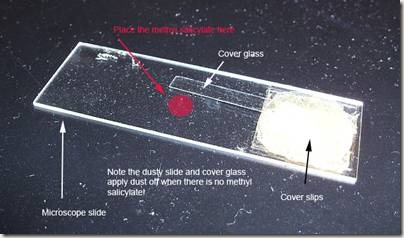
clip_image018

With the Coddington mount (CM) you should be able to move and position your specimen. However for smaller items you have to use fewer covelslips and this still won’t guarantee your specimen remains in position.

clip_image020

The Coddington mount should look like this (green is Vaseline, yellow is Methyl-salicylate).
Modify the Coddington mount: If you apply enough Vaseline, and do not press hard the cover glass into it, the other end of the cover glass could be pressed down creating a triangle. This would create a bigger surface tension fixing conveniently your specimen. Use tooth pickers to manipulate the cover glass, and never touch it from above.

With bended pins, or careful movements of the cover glass you can position and reposition it quite easily. Single hair brushes on tooth pickers are among the best tools to achieve this. Due the variable height you can use a bigger variety of items and even at the very same time. You also could position specimen in many angle in a higher space and fixing them by moving them towards the end of the glass cover.

clip_image021

The difference between the CM and MCM. CM above, MCM below.

image